Gastrulation und Bildung der Keimblätter
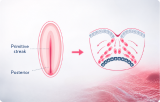
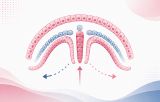
Gastrulation ist der fundamentale morphogenetische Prozess, der die Blastula durch hochgradig koordinierte zelluläre Umlagerungen in eine mehrschichtige Gastrula umwandelt, wodurch der embryonale Bauplan etabliert und die Keimblattbildung eingeleitet wird. Die Gastrulation nutzt Kombinationen morphogenetischer Bewegungen, einschließlich Epibolie, Invagination, Involution, Ingression, Delamination und bei vielen Bilateria der konvergenten Extension, die embryonale Zellen repositionieren und dabei Ektoderm, Mesoderm und Endoderm progressiv zuweisen. Obwohl die genauen morphogenetischen Strategien zwischen den Arten variieren, sind die zugrundeliegenden zellulären und molekularen Prinzipien konserviert und hängen von der Integration induktiver Signalübertragung, Genregulationsnetzwerken, dynamischem Zellverhalten und Gewebemechanik ab.
Aktuelle Modelle der Gastrulation zeigen, dass die Keimblattzuweisung durch reziproke Wechselwirkungen zwischen Morphogensignalisierung, Genregulationsnetzwerken und kontextabhängigem Zellverhalten gesteuert wird. Der Nodal-Signalweg, ein Mitglied der TGF-β-Superfamilie, liefert essentielle morphogenabhängige Positionsinformationen, die mesodermale und endodermale Schicksale spezifizieren, indem er transkriptionelle Programme aktiviert, die die mesendodermale Identität etablieren. Gleichzeitig trägt der Wnt/β-Catenin-Weg zur Bildung der embryonalen Achse bei und reguliert die Kompetenz für die mesodermale und endodermale Spezifikation durch Wechselwirkungen mit Nodal-abhängigen transkriptionellen Netzwerken. Die BMP-Signalisierung, moduliert durch Organisator-abgeleitete Antagonisten einschließlich Chordin und Noggin bei Wirbeltieren, etabliert abgestufte Signalumgebungen, die die ektodermale Differenzierung und die mesodermale Musterbildung regulieren. Die FGF-Signalisierung koordiniert die Linienspezifikation mit der Morphogenese, indem sie die Zellmotilität, -proliferation und -differenzierung reguliert und dabei intensiv mit Nodal-, Wnt- und BMP-Signalnetzwerken kooperiert.
Die Durchführung der Gastrulation erfordert präzise koordinierte Zellverhaltensweisen. Bei Arten, bei denen die Gastrulation einen epithelial-mesenchymalen Übergang (EMT) beinhaltet, reduzieren Epithelzellen die apiko-basale Polarität, remodellieren interzelluläre Verbindungen, erlangen migrationsfähige Eigenschaften und internalisieren sich in den Embryo. Diese mesenchymalen Populationen durchlaufen anschließend eine gerichtete Migration, die durch Signale der extrazellulären Matrix, chemotaktische Signale und mechanische Wechselwirkungen auf Gewebenebene geleitet wird, während sie dynamisch regulierte adhäsive Kontakte aufrechterhalten. Die Zellinterkalation treibt die konvergente Extension vorang und erzeugt eine mediolaterale Gewebeverengung gekoppelt mit einer axialen Verlängerung, die zur Bildung der Körperachse beiträgt. Diese polarisierte Umlagerung wird überwiegend durch den evolutionär konservierten Signalweg der planaren Zellpolarität reguliert, der die Zytoskelettorganisation und gerichtete Zellverhaltensweisen innerhalb der Ebene der embryonalen Gewebe orientiert.
Das Remodeling der extrazellulären Matrix bietet einen essenziellen mechanischen und biochemischen Rahmen für diese morphogenetischen Ereignisse. Die dynamische Regulation fibronektinreicher extrazellulärer Matrizen, der Laminin-Organisation, der integrinvermittelten Adhäsion, der Aktivität von Matrix-Metalloproteinasen und der Matrixzusammensetzung remodelliert die Gewebearchitektur, erleichtert die koordinierte Zellmigration und reguliert die Kraftübertragung während des großflächigen embryonalen Remodelings. Zusammen integrieren sich induktive Signalwege, transkriptionelle Genregulationsnetzwerke, die Dynamik der extrazellulären Matrix und mechanisch koordinierte Zellverhaltensweisen, um die drei primären Keimblätter zu etablieren und gleichzeitig eine robuste embryonale Musterbildung sicherzustellen. Diese breit konservierten zellulären und molekularen Prinzipien liegen der Gastrulation über Wirbeltiere und viele Wirbellosenlinien hinweg zugrunde und bieten weiterhin ein zentrales Paradigma zum Verständnis der frühen embryonalen Entwicklung, der Linienspezifikation und der Gewebemorphogenese.